博文
膜蛋白表达难点解析:VLP 纳米盘无细胞制备平台对比_ MedChemExpress (MCE)
|
膜蛋白表达又双叒叕翻车了?多次改造载体、反复调试诱导条件,到头来还是蛋白沉淀、低产量、无活性,下游实验也迟迟推进不了。膜蛋白独特的疏水跨膜结构,常规可溶性蛋白表达体系难以适用。本文梳理各类膜蛋白表达难点,对比 VLP、去垢剂、纳米盘、无细胞表达等制备平台,帮你快速选定适配方案,避开实验踩坑。
Section.01
膜蛋白分类
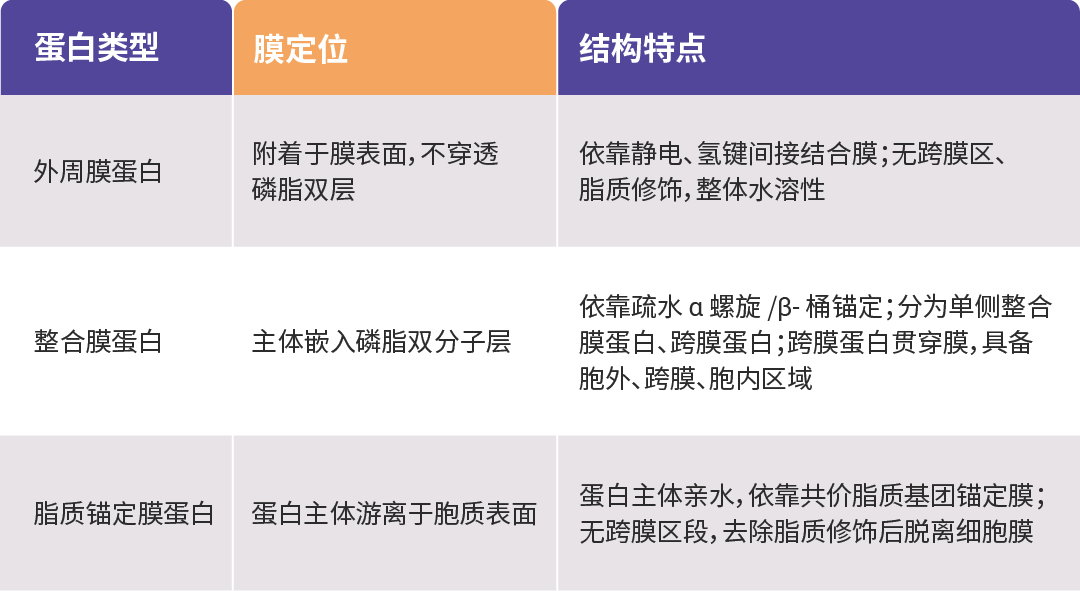
膜蛋白 (Membrane proteins) 是维系生命活动至关重要的核心功能单元,参与细胞信号传导、物质跨膜转运等关键生理过程[1][2]。在人类基因组里,约 30% 序列编码膜蛋白;超过六成上市药物以膜蛋白为靶点,是新药研发的热门方向[3][4]。生物学上,将与磷脂双分子层相结合、定位于生物膜区域的蛋白统称为膜蛋白。按照与细胞膜的结合形式及功能特点,膜蛋白可分为三类:外周膜蛋白、整合膜蛋白、脂质锚定膜蛋白 (图 1)[5][6][7]。
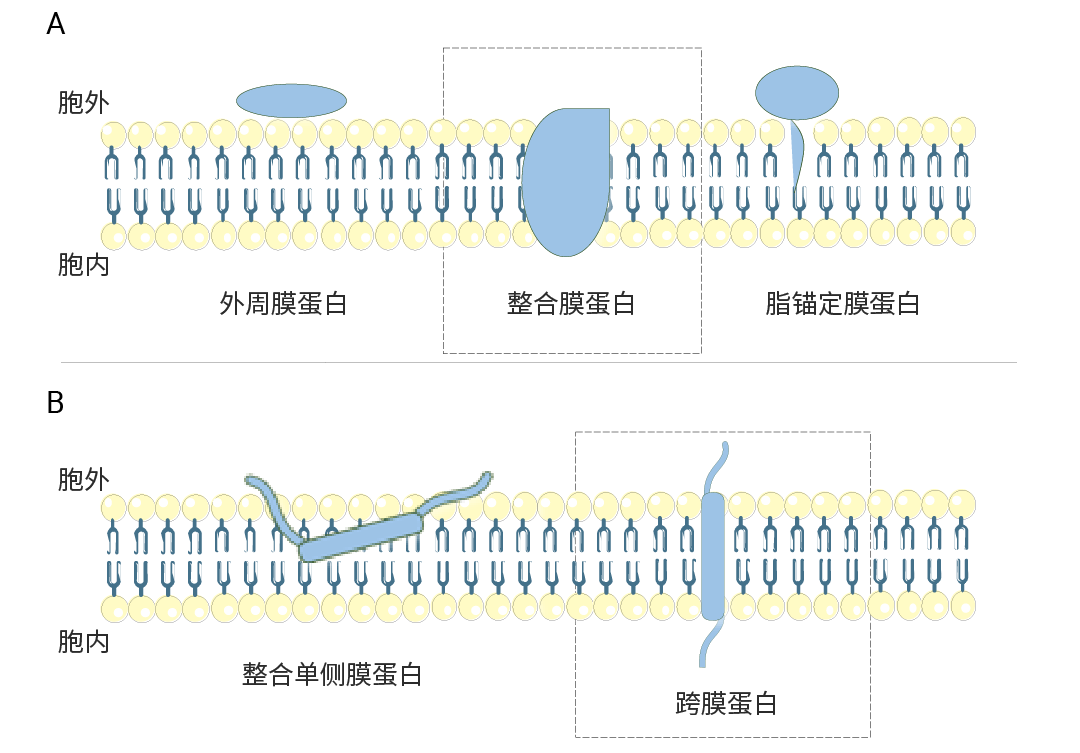 图 1.膜蛋白分类示意图[5]。
Section.02
跨膜蛋白表达难点
综合上述分类特征可以发现:外周、脂质锚定膜蛋白无贯穿膜层的跨膜区,整体水溶性强,常规表达体系即可制备;单侧整合膜蛋白疏水区域少,制备难度也较低。而跨膜蛋白完整穿透磷脂双层,拥有疏水跨膜区,结构复杂,长期以来都是重组表达、靶点药物开发中的一大难题。以下为跨膜蛋白表达时遇到的各类核心问题。
难点 1|疏水跨膜区极易聚集沉淀
膜蛋白本质是两亲性分子:胞外、胞内区亲水,跨膜区由 20–30 个疏水氨基酸组成[8][9]。在细胞膜里,脂双层可包裹疏水区域防止聚集;体外环境下疏水区域暴露,蛋白极易沉淀,难以纯化。因此,纯化时一般需添加去垢剂包裹跨膜区,模拟磷脂环境,稳定蛋白构象、避免聚集。
难点 2|过表达引发宿主毒性
过量表达膜蛋白会占用细胞内膜转运通路,破坏细胞膜结构并诱发宿主应激,从而导致细胞生长受阻、蛋白产量下降,甚至细胞裂解[10][11]。针对这种毒性问题,蛋白表达时可选用耐受菌株、低温弱诱导方案,或采用无细胞表达体系从根源规避影响。
难点 3|跨膜结构复杂,折叠困难
跨膜蛋白依靠跨膜区嵌入磷脂双分子层完成折叠、定向,并经翻译后修饰获得活性构象。异源宿主的膜环境、分子伴侣及修饰通路与天然体系存在差异,易引发蛋白折叠、定位缺陷[12]。对此,可选用真核表达系统,搭配共表达分子伴侣、温和诱导的方式,降低错误折叠概率。
Section.03
多种膜蛋白表达平台
VLP 平台
病毒样颗粒 (VLP,Virus-like particle) 是由病毒骨架蛋白自组装形成,为不含病毒核酸的空心颗粒。通过共表达病毒骨架蛋白与目标跨膜蛋白,骨架蛋白在细胞膜内侧自发聚集,诱导膜向外凸起;跨膜蛋白随之富集,经膜出芽、脱落形成带有天然脂质包膜的 VLP,跨膜蛋白定向展示在包膜表面[13][14]。VLP 组装依赖宿主的天然膜系统,无需去垢剂,蛋白处于天然磷脂环境,可以较好保留天然构象与活性。但出芽过程会携带其他宿主杂蛋白,样本背景偏高,不适合配体-蛋白互作实验。
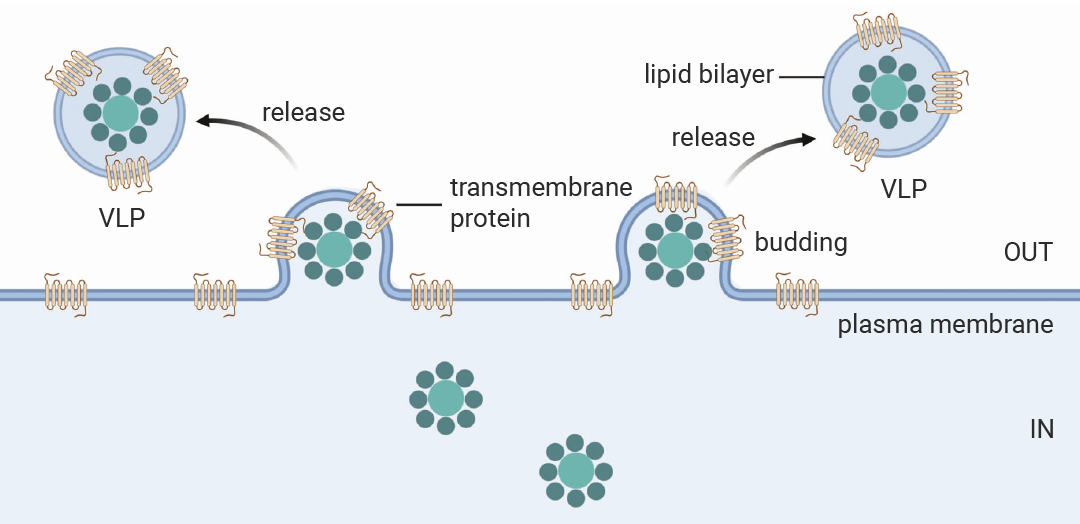
图 2.VLP 组装跨膜蛋白的过程[14]。
产品推荐:
CD20/MS4A1 Protein-Nanodisc, Human (HEK293, His) (HY-P704449)
(www.medchemexpress.cn/recombinant-proteins/cd20-ms4a1-protein-human-hek293-his-nanodisc.html)
B 淋巴细胞特异性膜蛋白,参与调节钙内流及 B 细胞受体信号传导,是利妥昔单抗、奥妥珠单抗等多种抗体的重要靶点;纳米盘形式纯度高、背景低。
ACSL1 Protein, Human (HEK293, His-Avi, Detergent) (HY-P705521)
(www.medchemexpress.cn/recombinant-proteins/acsl1-protein-human-hek293-his-avi.html)
酰基辅酶 A 合成酶长链家族成员 1,是连接脂肪酸与能量代谢、脂质合成的核心“开关”,其功能异常会影响全身的脂质稳态和能量平衡。
STEAP2 Protein, Human (sf9, Flag, Detergent) (HY-P706253)
(www.medchemexpress.cn/recombinant-proteins/steap2-protein-human-sf9-flag-detergent.html)
一种金属还原酶,主要负责将三价铁还原为二价铁、二价铜还原为一价铜,促进细胞对铁和铜的摄取,常通过影响铜/铁代谢和激活 MAPK、PI3K/AKT 等信号通路来促进肿瘤进展。
CCR1 Protein-VLP, Human (HEK293, His) (HY-P705979)
(www.medchemexpress.cn/recombinant-proteins/ccr1-protein-vlp-human-hek293-his.html)
趋化因子受体,介导免疫细胞迁移与募集,参与类风湿性关节炎
200x Protein Detergent Buffer A (HY-P7B001)
(www.medchemexpress.cn/recombinant-proteins/200x-protein-detergent-buffer-a.html)
含 10% DDM 与 2% CHS 的膜蛋白去垢剂缓冲液,用于溶解膜蛋白并维持其结构与功能完整性 。
MRGPRX2 Protein, Human (Cell-Free, His) (HY-P702380)
(www.medchemexpress.cn/recombinant-proteins/mrgprx2-protein-human-cf-his.html)
肥大细胞特异性受体,介导非 IgE 依赖的过敏样反应 (如药物诱导的荨麻疹) ,是慢性自发性荨麻疹、疼痛及神经炎症的潜力靶点。
SLC7A11 Protein, Human (Cell-Free, His) (HY-P702444)
(www.medchemexpress.cn/recombinant-proteins/slc7a11-protein-human-cf-his.html)
胱氨酸/谷氨酸逆向转运蛋白,维持细胞氧化还原稳态并抑制铁死亡,在多种癌症中高表达且与不良预后相关,是肿瘤治疗的潜力靶点。
参考文献:
[1] Vaitsopoulou A, et al. Membrane Protein Production in Insect Cells. Methods Mol Biol. 2022;2507:223-240.
[2] Peled-Zehavi H, et al. Membrane Protein Insertion in Cells: Principles, Pathways, and Quality Control. Chem Rev. 2026;126(11):6526-6549.
[3] Duart G, et al. Experimental and computational approaches for membrane protein insertion and topology determination. Methods. 2024;226:102-119.
[4] Young JW. Recent advances in membrane mimetics for membrane protein research. Biochem Soc Trans. 2023;51(3):1405-1416.
[5] Van Campenhout R, et al. Therapeutic Nanobodies Targeting Cell Plasma Membrane Transport Proteins: A High-Risk/High-Gain Endeavor. Biomolecules. 2021 Jan 6;11(1):63.
[6] Boulos I, et al. Exploring the World of Membrane Proteins: Techniques and Methods for Understanding Structure, Function, and Dynamics. Molecules. 2023 Oct 19;28(20):7176.
[7] Zhao X, et al. Precise Regulation of Membrane Proteins: From Physical Technology to Biomolecular Strategy. Adv Sci (Weinh). 2026 Feb;13(10):e10367.
[8] Zhou Z, et al. Advances in solubilization and stabilization techniques for structural and functional studies of membrane proteins. PeerJ. 2025 Apr 4;13:e19211.
[9] Ryu H, et al. Biomimetic Membranes with Transmembrane Proteins: State-of-the-Art in Transmembrane Protein Applications. Int J Mol Sci. 2019 Mar 21;20(6):1437.
[10] Snoeck S, et al. "Metabolic burden" explained: stress symptoms and its related responses induced by (over)expression of (heterologous) proteins in Escherichia coli. Microb Cell Fact. 2024 Mar 30;23(1):96.
[11] Gubellini F, et al. Physiological response to membrane protein overexpression in E. coli. Mol Cell Proteomics. 2011 Oct;10(10):M111.007930.
[12] Smalinskaitė L, et al. The Biogenesis of Multipass Membrane Proteins. Cold Spring Harb Perspect Biol. 2023 Apr 3;15(4):a041251.
[13] Hurley JH, et al. Inside job: how the ESCRTs release HIV-1 from infected cells. Biochem Soc Trans. 2018 Oct 19;46(5):1029-1036.
[14] 朱珊,等.病毒样颗粒的制备研究与应用进展[J].中国生物工程杂志,2025,45(Z1):68-79.
https://blog.sciencenet.cn/blog-3536222-1557774.html
上一篇:糖鞘脂关键酶 UGCG 结构及靶向药物研发直播解读_ MedChemExpress (MCE)

