博文
Science:肌肉也懂养生之道?
||
Science:肌肉也懂养生之道?
初稿 | 吴世林
校对 | 陈芳芳 胡敏
小编注 | 陈芳芳 胡敏 吴世林
排版 | 吴世林
编辑 | 孟美瑶
背景介绍
衰老肌肉干细胞(MuSC,muscle stem cell)最具代表性的表型特征之一,表现为细胞脱离静止状态重新进入细胞周期的速率减慢。这种减慢直接导致了衰老肌肉在损伤后再生速率的下降。事实上,对年轻和衰老的MuSCs进行的转录组学分析表明,细胞周期和增殖通路是随年龄增长而改变得最显著的通路之一。然而,衰老与MuSCs激活减慢之间的直接机制联系仍未完全阐明。
敲黑板啦!
1、衰老导致肌肉干细胞中NDRG1表达升高,抑制PI3K–AKT–mTOR信号,从而延缓MuSCs激活和肌肉再生;
2、在老年MuSCs中敲除NDRG1,可加快其从静息状态激活,并改善单次损伤后的肌肉再生;
3、NDRG1通过降低MuSCs的激活速度来增强其韧性和长期维持能力;
4、NDRG1high MuSCs在衰老肌肉中存活并富集,形成细胞幸存者偏差。
研究结果
1、肿瘤抑制因子NDRG1在衰老MuSCs中表达上调
为了鉴定可能导致MuSC激活速率随年龄增长而下降的遗传变化,研究人员分析了年轻和衰老小鼠MuSCs的转录组数据。RNA-seq数据的主成分分析(PCA)结果显示,年轻和衰老的MuSCs之间存在明显的分离,这表明存在与年龄相关的全局转录差异(图1A)。在生长因子信号转导和细胞周期相关基因中,N-myc下调基因1(Ndrg1,N-myc down-regulated gene 1)的表达随年龄变化最为显著,在衰老的MuSCs中,其表达量增加了3.5倍(图1B、1C和S1A)。NDRG1通过抑制多种生长因子信号通路,在多种细胞类型中发挥肿瘤抑制基因的作用。研究人员对后肢肌肉分离的肌纤维进行免疫荧光染色,以及对分离出的MuSCs进行蛋白质免疫印迹分析,证实了衰老的MuSCs中NDRG1蛋白的积累增加(图1D、S1B和S1C)(小编注:图1D表示年轻和年老小鼠的EDL单根肌纤维的代表性免疫荧光图像;图S1C表示年轻和年老小鼠Soleus单肌纤维的代表性免疫荧光图像。二者主要是为了在不同肌群(不同肌肉部位)来验证NDRG1表达上调的普遍性。其中CTCF的计算主要为了矫正总细胞荧光强度,专门用于消除背景噪音,准确衡量单个细胞内目标蛋白(如NDRG1)的实际荧光表达量。其计算方式如下:CTCF=目标细胞的整合密影度(总荧光)-(细胞面积×背景平均荧光强度),其中整合密影度是指特定选区内所有像素灰度值/荧光强度的总和。)。
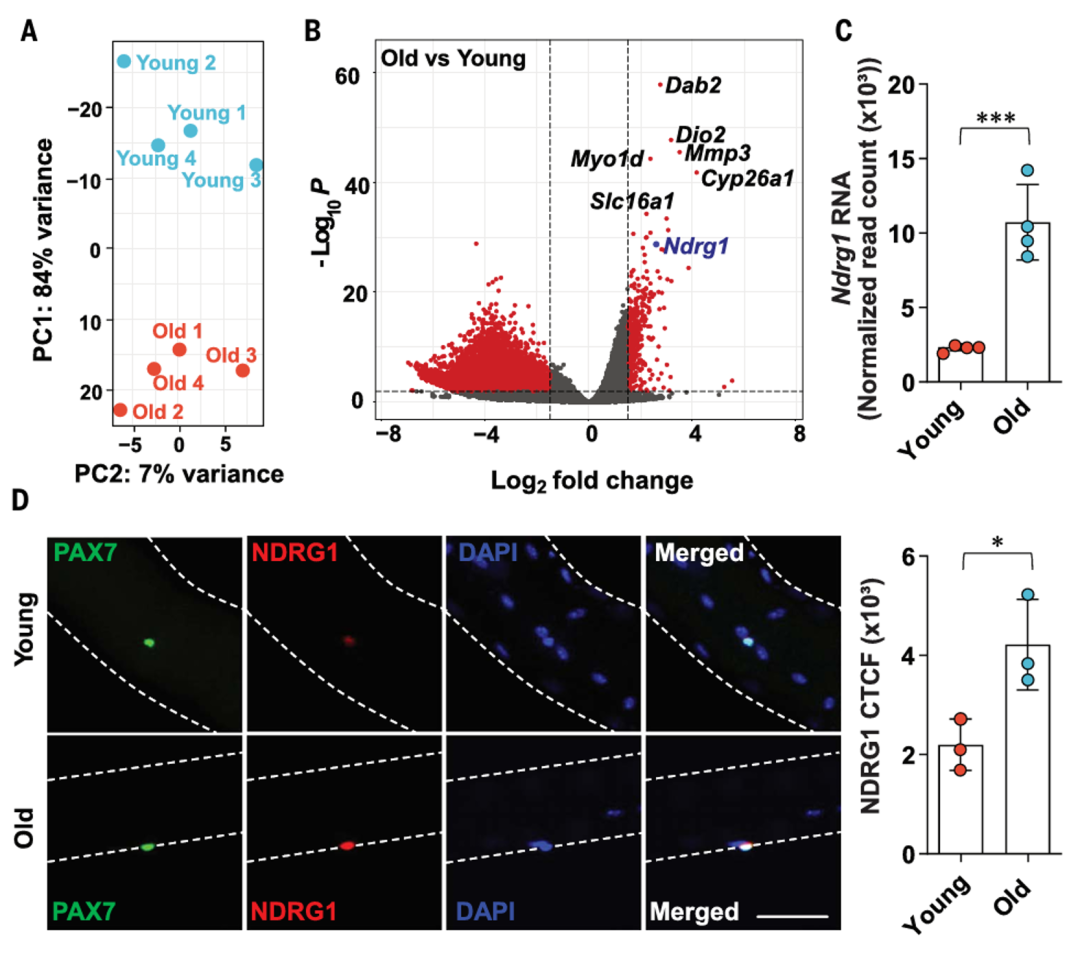
图1 | 衰老MuSCs中NDRG1的转录本和蛋白的丰度增加
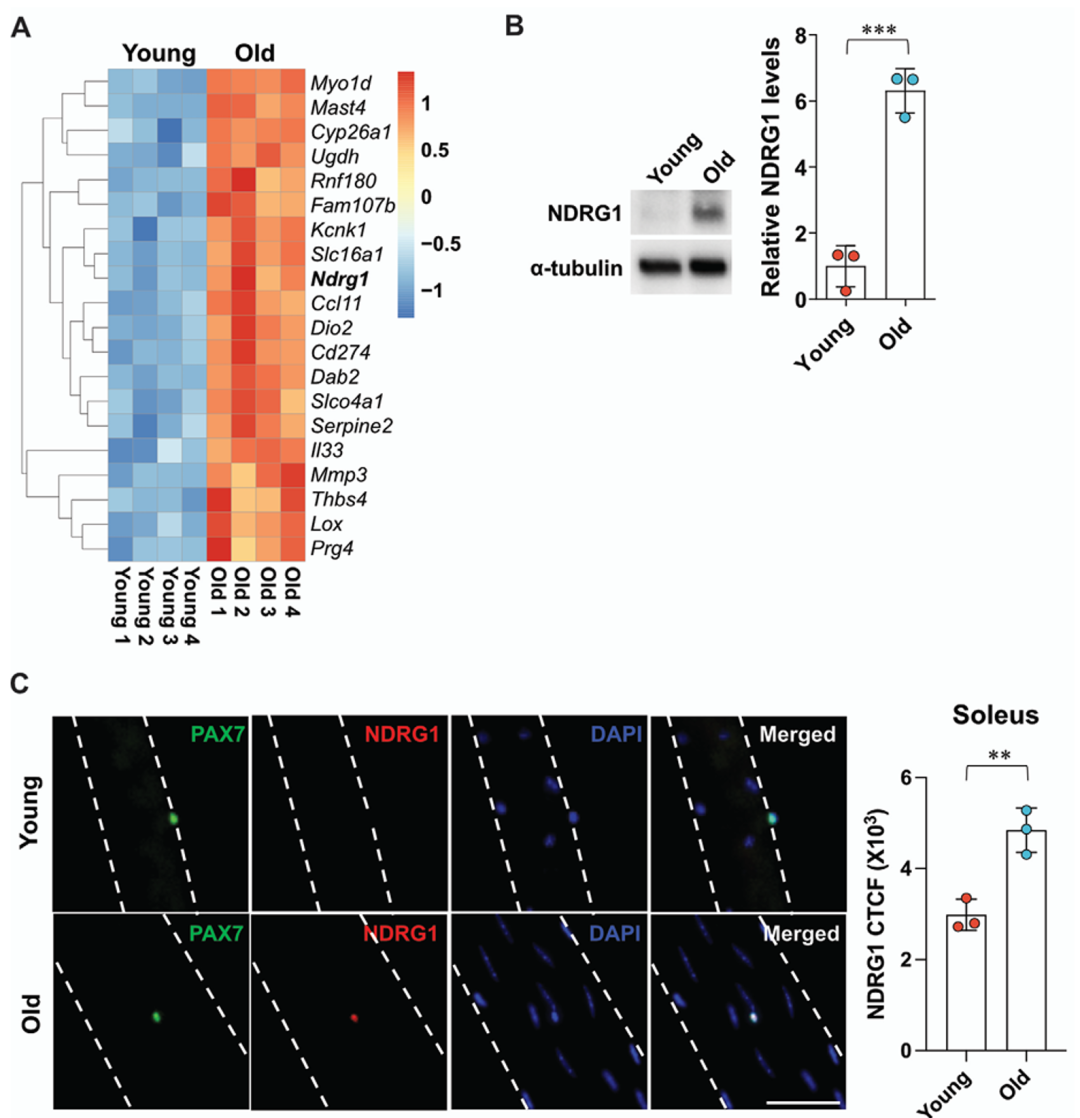
图S1 | 小鼠MuSCs中NDRG1的表达量随年龄增长而增加
2、衰老小鼠MuSCs中敲除NDRG1基因,可导致MuSCs的激活增强和肌肉再生速率的提高
研究人员推测,NDRG1表达量随年龄增长而增加,这或许可以解释衰老MuSCs进入细胞周期的速率为何降低。为了验证这一点,研究人员构建了可在MuSCs中特异性敲除NDRG1的条件性敲除小鼠(Pax7PCER/+; NDRG1fl/fl; ROSACVFP/+,简称NDRG1cKO小鼠),以便在注射他莫昔芬(TMX)后敲除NDRG1(图S2A)。研究人员通过对分离出的MuSCs进行蛋白质免疫印迹分析以及对分离出的肌纤维进行免疫荧光染色,来证实NDRG1的缺失(图2A和2B)。为了探究NDRG1在衰老过程中的功能,将NDRG1cKO小鼠饲养至约20月龄,经TMX注射治疗两周后,分别从WT和NDRG1cKO小鼠的后肢肌肉中分离出MuSCs(图2C)。与对照组相比,衰老NDRG1cKO小鼠的MuSCs在激活期间进入S期的速率和线粒体积累的量显著增加,达到了与年轻MuSCs相当的水平(图2D和2E)。为了评估在体内NDRG1缺失促进MuSC激活中的作用,研究人员在约20月龄的NDRG1cKO和WT小鼠肌肉损伤后注射了EdU。3天后,分离出了活化的MuSCs(图2F)。与离体实验结果一致,研究人员发现来自衰老NDRG1cKO小鼠的MuSCs表现出更高的体内活化速率,其程度与年轻MuSCs相当(图2G)(小编注:在图2G中,是有呈现年轻对照的结果的。这是一种“基线标注法”,也就是在图2G柱状图上方有一条虚线Y,其对应的数据正是Young的统计结果。其他的数据可以直接对比看是否恢复到年轻小鼠的水平,且这样的作图方式更为简洁。)。
随后,研究人员研究了衰老肌肉特有的再生速率减慢是否可能由衰老MuSCs中NDRG1表达量的增加所驱动。研究人员首先使衰老的WT和NDRG1cKO小鼠的双侧胫骨前肌发生了损伤,并在7天后测量其再生程度(图2F)。结果显示,NDRG1cKO小鼠的肌肉再生速率有所增加(图2H和S2B)(小编注:正常成熟肌纤维细胞核偏周边,而损伤后新生/再生肌纤维常出现中央核。此项研究中,肌肉再生速率的增加并不是通过中心成核肌纤维的百分比来定量的,而是锁定中心成核肌纤维并通过其横截面积作为定量与对比指标。研究人员在损伤后第7天取小鼠胫骨前肌切片,利用Myotally软件分析整张肌肉切片中的所有中心成核肌纤维。计算这些新生肌纤维的平均横截面积来衡量再生程度。图2H展示了老年NDRG1cKO小鼠的中心成核肌纤维平均CSA显著高于老年WT小鼠。CSA面积越大,说明单根新生肌纤维生长得越粗壮、成熟度越高,因此再生速率越快。图S2B展示了中心成核肌纤维大小的整体分布,老年cKO小鼠的曲线峰值右移,证明cKO组的大尺寸肌纤维多,中心成核肌纤维整体尺寸分布均偏向更大面积,这从群体水平上确证了cKO组的肌纤维整体再生能力更强。)。相比之下,年轻的NDRG1cKO小鼠的肌肉再生情况与同龄对照组相比没有发现显著变化(图S2C和S2D)。因此,衰老MuSCs中NDRG1表达的升高介导了衰老肌肉中MuSCs激活速率减慢,并介导了衰老肌肉中肌肉再生能力的下降。
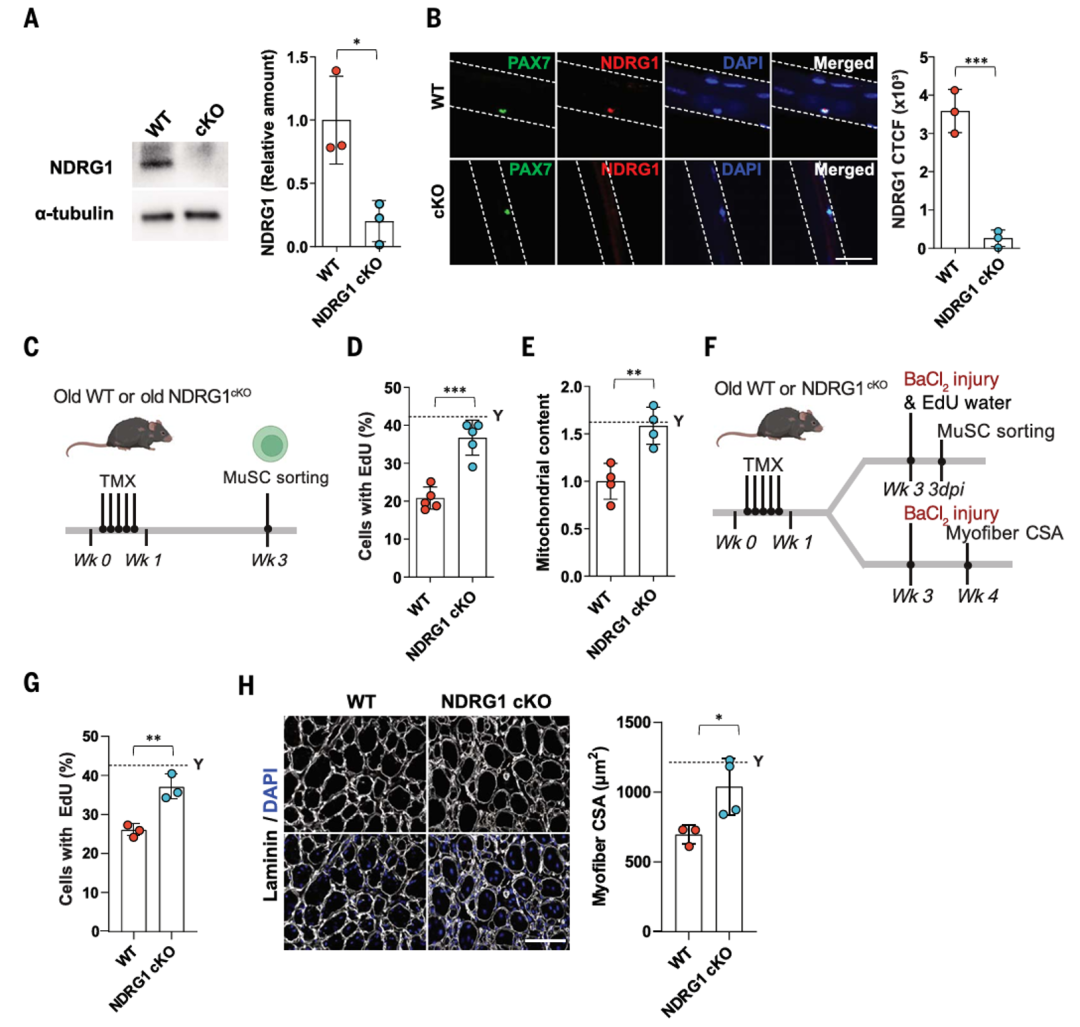
图2 | 衰老MuSCs中NDRG1敲除后,MuSCs激活增强且肌肉再生改善
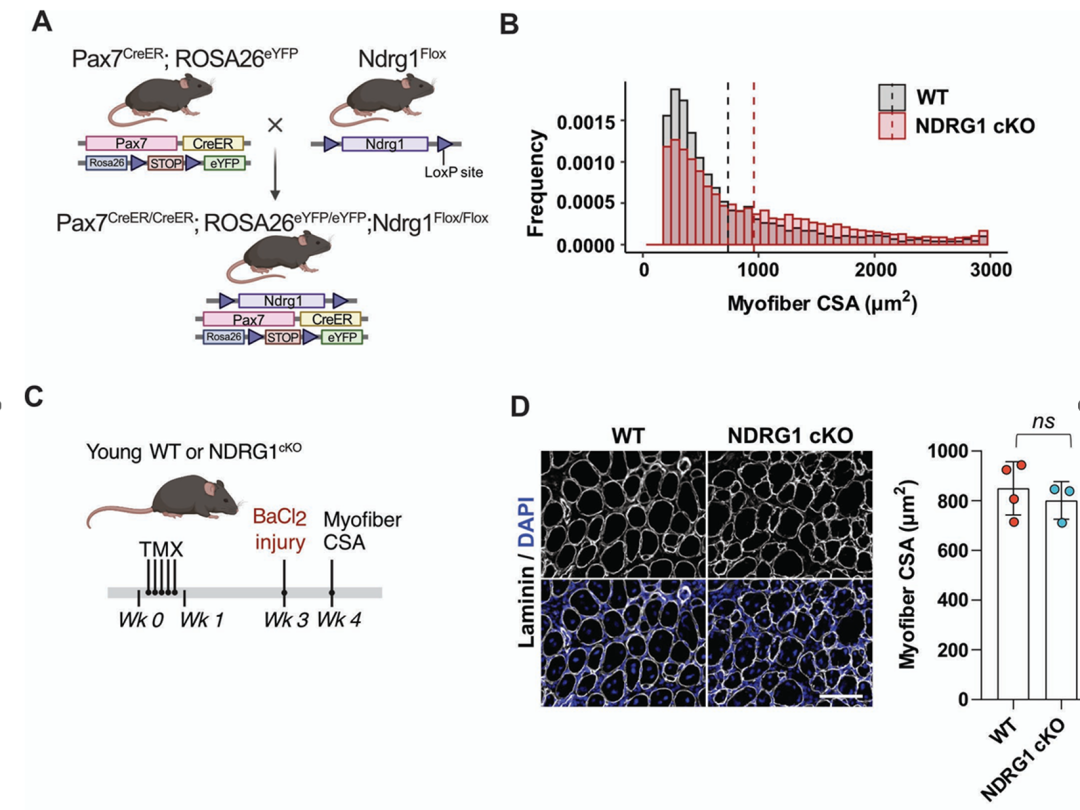
图S2 | MuSCs中NDRG1的敲除增强了老年小鼠的肌肉再生能力
3、在衰老的MuSCs中敲除NDRG1会导致细胞存活能力受损,并在连续损伤后出现再生缺陷
衰老MuSCs的另一表型特征是细胞存活和恢复能力受损(小编注:衰老MuSCs在细胞存活和恢复能力上的受损,表型上表现为激活过程中凋亡率显著升高、对基因毒性应激的耐受性下降,以及在体内移植或重复损伤后细胞数量迅速减少,最终导致再生潜能进行性耗竭和肌肉修复失败。其分子基础涉及多个层面的协同紊乱:在代谢层面,衰老MuSCs中谷胱甘肽(GSH)耗竭且呈双峰分布,GSH低表达亚群因NF-κB过度激活而抑制NRF2驱动的抗氧化基因转录,无法有效清除活性氧,从而加剧氧化性DNA损伤和细胞死亡;在表观遗传层面,由于亚精胺合成过度消耗甲基供体S-腺苷甲硫氨酸(SAM),导致H3K9me2/me3和HP1α等异染色质标志丢失,染色质开放度增加和转座子去抑制,进而诱发基因组不稳定和DNA损伤累积,进一步削弱了细胞在激活过程中的生存能力;同时,衰老微环境中Notch配体表达不足使Hey转录因子下调,解除对Mdm2启动子的抑制,导致p53降解加速,使带有DNA损伤的MuSCs无法启动p53介导的检查点,从而在分裂时发生有丝分裂灾难。这些机制共同构成一个恶性循环,使衰老MuSCs的再生功能恢复力因存活与增殖间的内在冲突而严重受损。参考文献:[1] Benjamin, et al. Cell Metabolism, 2023; [2] Liu, et al. Cell Stem Cell, 2018; [3] Kang, et al. Nature Metabolism, 2024.)。鉴于衰老NDRG1cKO小鼠的MuSCs在激活速率方面表现出“返老还童”的现象,研究人员接着检测了NDRG1缺失是否会影响衰老MuSCs的存活率,结果发现,与对照组相比,其存活能力确实有所下降(图3A)(小编注:论文中检测死细胞的标准方法是流式细胞术结合Annexin V和PI双染色,Annexin V可以结合凋亡早期细胞外翻的磷脂酰丝氨酸,标记凋亡细胞。PI是一种不能透过活细胞膜、但能穿透死细胞或晚期凋亡细胞膜的DNA染料。只有同时被Annexin V和PI染色的细胞才被计为死细胞。在细胞层面,主要通过细胞表面标记物和增殖标记物来区分静息态和激活态。论文中选用CALCR(降钙素受体)作为静息态MuSCs的特异性标记物,PAX7是MuSCs身份标志物,因此CALCR⁺/PAX7⁺的细胞被认定为静息态干细胞。论文中使用EdU掺入实验来标记正在进行DNA复制(S期)的激活态干细胞,此外,MYOD是肌源性分化决定因子,是肌肉干细胞激活并启动生肌程序的关键转录因子;Ki67则标记所有处于细胞周期活跃状态(非G0期)的细胞,因此MYOD和Ki67的表达也可作为细胞进入激活和增殖状态的标志。NDRG1 cKO的表型是衰老MuSCs激活和再生加速,但也让细胞更容易死亡。图3A揭示了无论是直接进行死细胞染色检测还是培养40h(让细胞处于从静息态被激活、准备进入细胞周期的阶段)检测死细胞比例。缺乏NDRG1保护的细胞本身就变得更加脆弱,且同样无法有效抵御细胞周期重启带来的代谢压力。因此,与正常衰老的WT相比,NDRG1 cKO的存活能力显著受损,死细胞比例明显更高。)。同样,研究人员在使用CalcR染色后发现,衰老NDRG1cKO小鼠在肌肉损伤后21天,其静息状态的MuSCs的数量减少(图3B和S3A)(小编注: PAX7是肌肉干细胞身份标志物,PAX7始终在细胞核中稳定存在,其表达不随细胞状态变化而变化。图3B用PAX7⁺标记总的MuSCs,结果显示衰老NDRG1cKO小鼠总的MuSCs数量显著降低。图S3A用CALCR⁺/PAX7⁺标记静息态MuSCs,结果显示衰老NDRG1cKO小鼠的静息态MuSCs占比与对照组无差异。说明在损伤后第21天,虽然cKO组的MuSCs总数变少了,但幸存下来的那部分MuSCs中,能够重新建立静息态(表达CALCR)的细胞比例与正常衰老的WT小鼠是差不多的。作者所说的衰老NDRG1cKO小鼠在肌肉损伤后21天,其静息状态的MuSCs的数量减少,是图3B的MuSCs总数量减少和S3A的静息态细胞比例不变共同基础下得到的结论。)。由于肌肉损伤后MuSCs存活受损可能会导致后续损伤时肌肉再生能力下降,研究人员又在衰老NDRG1cKO和WT小鼠的肌肉中诱导了两次连续性损伤(图3C)。组织学分析显示,虽然NDRG1cKO小鼠的MuSCs本身具有更强的再生潜能,但其在第二次损伤后也表现出肌肉再生障碍,这很可能是由可用于再生的MuSCs储备减少所致(图3D)。并且,研究人员还观察到,在NDRG1cKO小鼠的肌肉在第二次受损21天后,小鼠的静息状态MuSCs的数量进一步减少(图3E)。
因此,NDRG1可能介导了衰老MuSCs中一种关键的表型权衡。虽然NDRG1的表达削弱了MuSCs快速激活和有效再生肌肉的能力,但也同时促进了MuSCs的存活能力,这表明在激活速率与恢复能力之间存在权衡关系。为了验证NDRG1随年龄积累增长而增加是否是为了某种存活偏向(即该偏向更优先保障细胞的韧性而非细胞功能),研究人员首先在小鼠年轻时开始敲除MuSCs中的NDRG1,随后将这些小鼠饲养至18至20月龄(图3F)。事实上,与同龄WT对照相比,衰老的NDRG1cKO小鼠的MuSCs总数量减少(图3G、S3B和S3C)。并且,衰老NDRG1cKO小鼠的肌肉再生也表现出显著延迟,这很可能是由于存活下来的MuSCs数量减少所导致(图3H)。研究人员认为,尽管衰老过程中机体会筛选出恢复力更强的细胞,然而衰老MuSCs的整体恢复力仍不及年轻MuSCs。NDRG1虽能增强这种恢复力,但仍有其他多种因素共同作用,导致老年MuSCs的韧性始终无法达到年轻水平。
这种关于细胞衰老的幸存者偏差理论,让研究者思考了一个关键的进化问题:如果NDRG1的表达可以赋予细胞生存优势并在衰老过程中被自然选择所保留,那么,既然它在自然选择压力最强的青年时期不为机体提供益处,为什么NDRG1没有直接从基因库中被剔除呢?为了研究这个问题,研究人员将年轻小鼠MuSCs中的NDRG1基因进行敲除,并测量了单次损伤或连续损伤后的肌肉再生情况(图S3D)。尽管如前所述,敲除NDRG1对单次损伤后年轻肌肉的再生没有显著影响(图S2D),但这会伴随年轻小鼠的总MuSCs数量下降(图S3E和S3F)。在面对再次损伤时,研究人员观察到肌肉中的总MuSCs数量进一步减少,并且此时出现了再生能力障碍(图S3G和S3H)。研究人员认为,这些结果支持了一种权衡模型:年轻干细胞中维持的NDRG1的低水平表达,一方面能确保快速再生,另一方面也保留了基础水平的恢复能力,使其能够适应年轻动物的组织环境并维持存活;然而,在衰老组织更加恶劣的微环境中,这种抗逆性则不足以维持其生存。
为了验证“年轻MuSCs中NDRG1升高也会带来不利影响”这一假设,研究人员从年轻小鼠肌肉中分离出NDRG1表达量最高的那群MuSCs,并将其与来自同一小鼠的NDRG1表达量最低的MuSCs进行功能检测比较(图S4A和S4B)(小编注:这里作者首先通过FSC/SSC、去除双细胞及CD31⁻CD45⁻Sca1⁻VCAM⁺等一系列圈门分析,获得纯化的MuSCs。作者在流式分选时并没有直接使用NDRG1作为表面分选marker,而是根据MuSC的FSC,也就是细胞大小,将两个极端大小的细胞群分选出来。随后在图S4B中进行验证,发现较小的MuSCs群体富集NDRG1High细胞,而较大的MuSCs群体富集NDRG1Low细胞。后续实验也表明,MuSCs激活伴随细胞体积增大,因此这一结果与NDRG1High MuSCs更偏静息、激活较慢的状态相吻合。)。与NDRG1低表达的MuSCs(NDRG1low)相比,年轻的NDRG1高表达MuSCs(NDRG1high)的激活速率降低(图S4C)。随后,研究人员对NDRG1high和NDRG1low MuSCs进行了移植,并通过生物发光成像监测细胞情况。移植NDRG1high MuSCs的肌肉中生物发光强度显著降低,这与激活速率减慢的表型相一致(图S4D)(小编注:作者这里用的不是EdU,利用的BLI(bioluminescence)生物发光。他们是从FVB-Tg(CAG-luc,-GFP) 转基因鼠中分选得到的MuSCs,该小鼠在CAG启动子驱动下表达firefly luciferase(萤火虫荧光素酶),研究人员移植之后在移植的小鼠体内注入荧光素酶的底物D-luciferin之后,注射后立即使用IVIS Lumina II活体成像系统(PerkinElmer)对小鼠进行成像。)。为了独立验证NDRG1在年轻MuSCs中表达上调的后果,研究人员对从年轻小鼠体内新鲜分离的MuSCs中过表达了NDRG1(图S4E)。结果发现,NDRG1的过表达导致激活速率降低(图S4F)。同样,移植了NDRG1过表达细胞的肌肉所显示的信号强度显著低于对照细胞(图S4G)。
尽管在对照条件下,研究人员未观察到NDRG1的过表达对MuSCs的存活率产生显著影响,但在氧化应激条件下,过表达NDRG1的MuSCs表现出更好的存活能力(图S4H和S4I)。因此,在年轻MuSCs中过表达NDRG1会减慢其激活速率,但与衰老的MuSCs一样,这伴随着抗逆能力的增强。
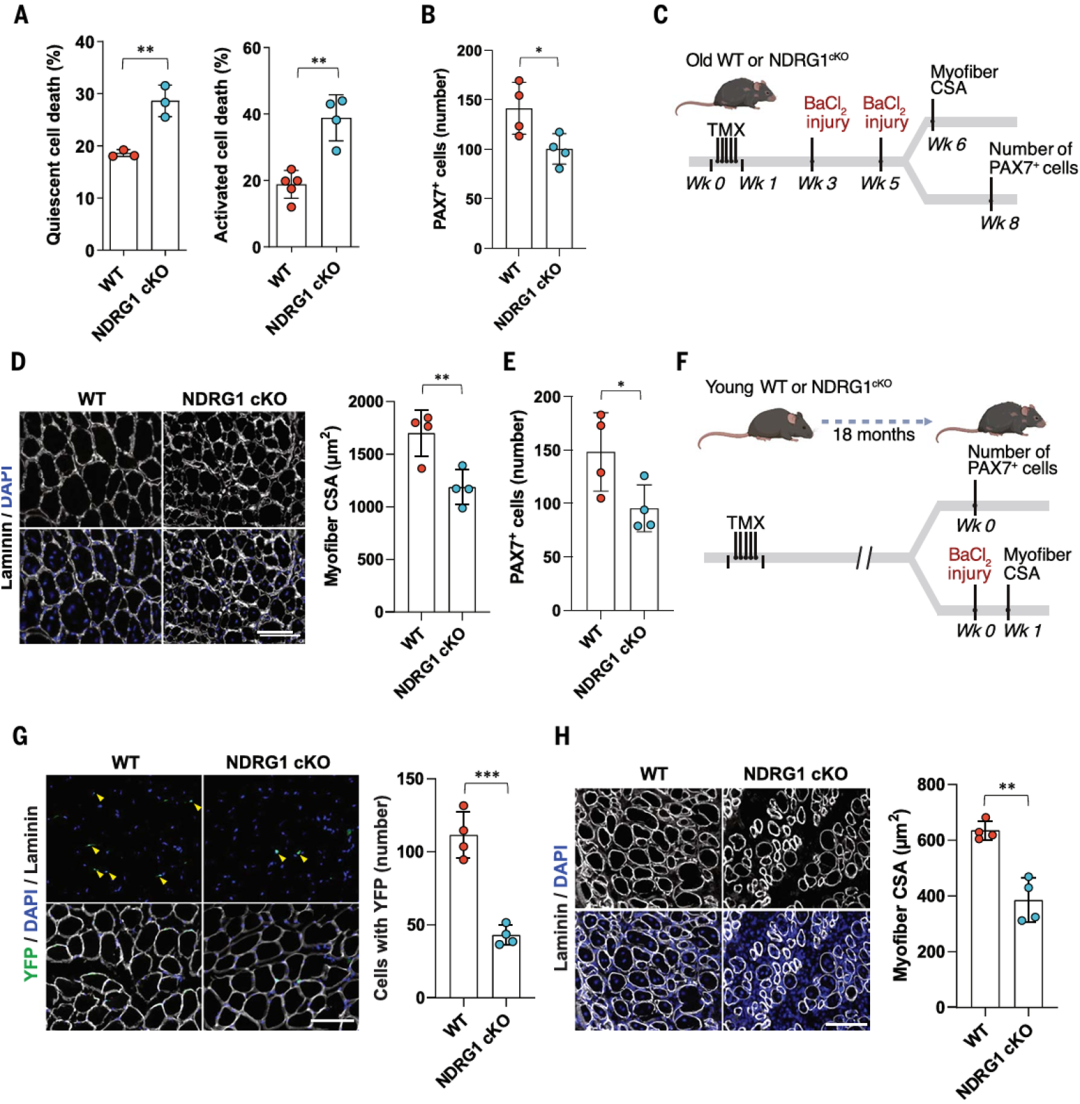
图3 | 敲除NDRG1的MuSCs在连续损伤后,衰老肌肉的细胞存活受损并出现再生能力缺陷
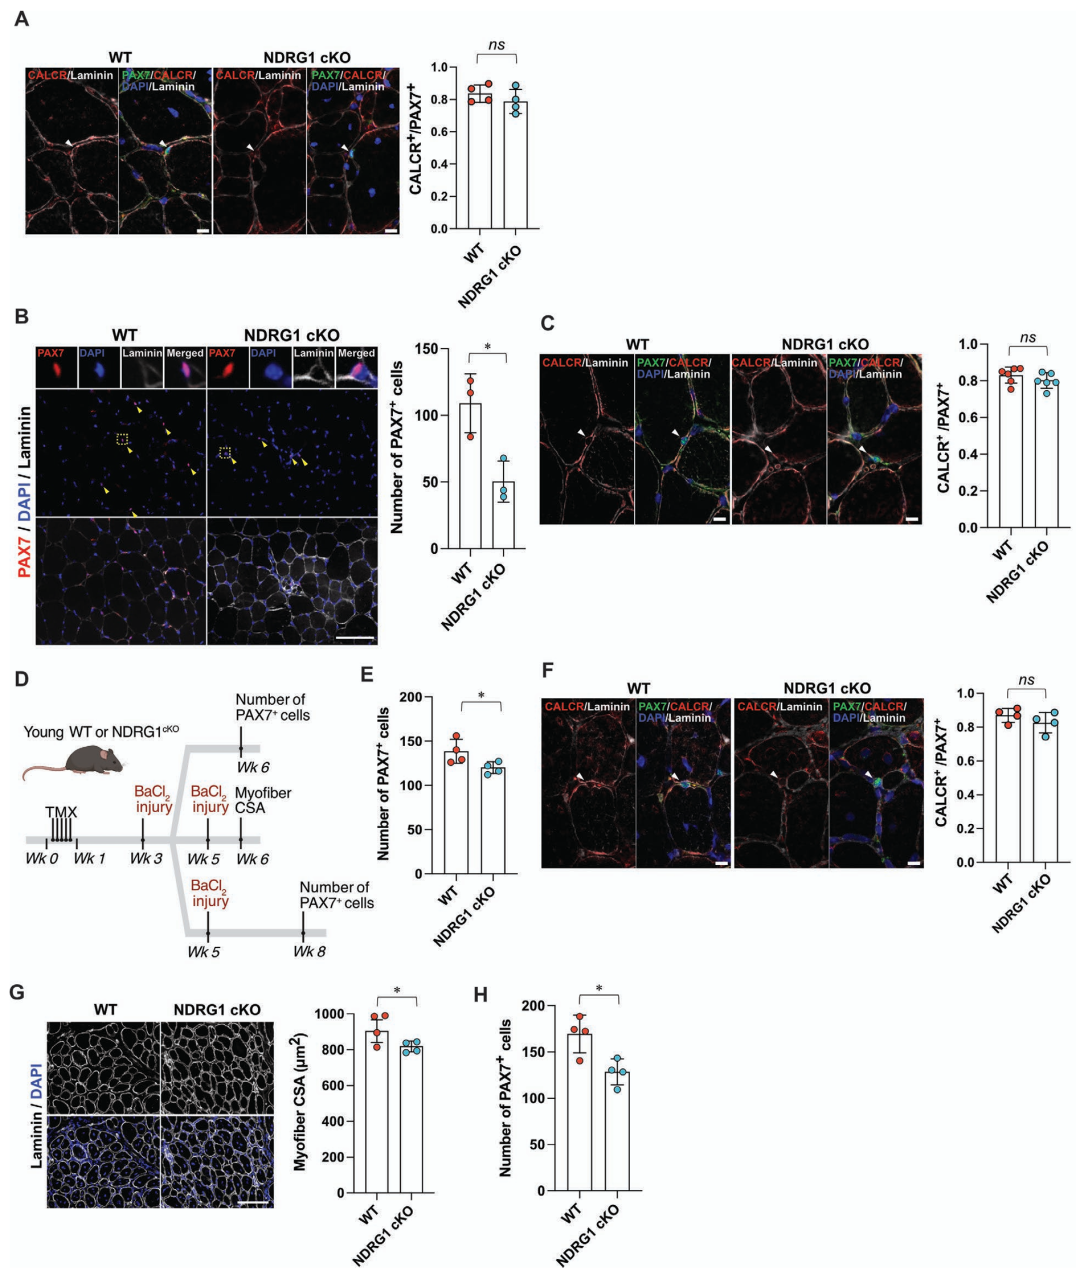
图S3 | NDRG1敲除减少了小鼠体内静息状态肌肉干细胞的储备量
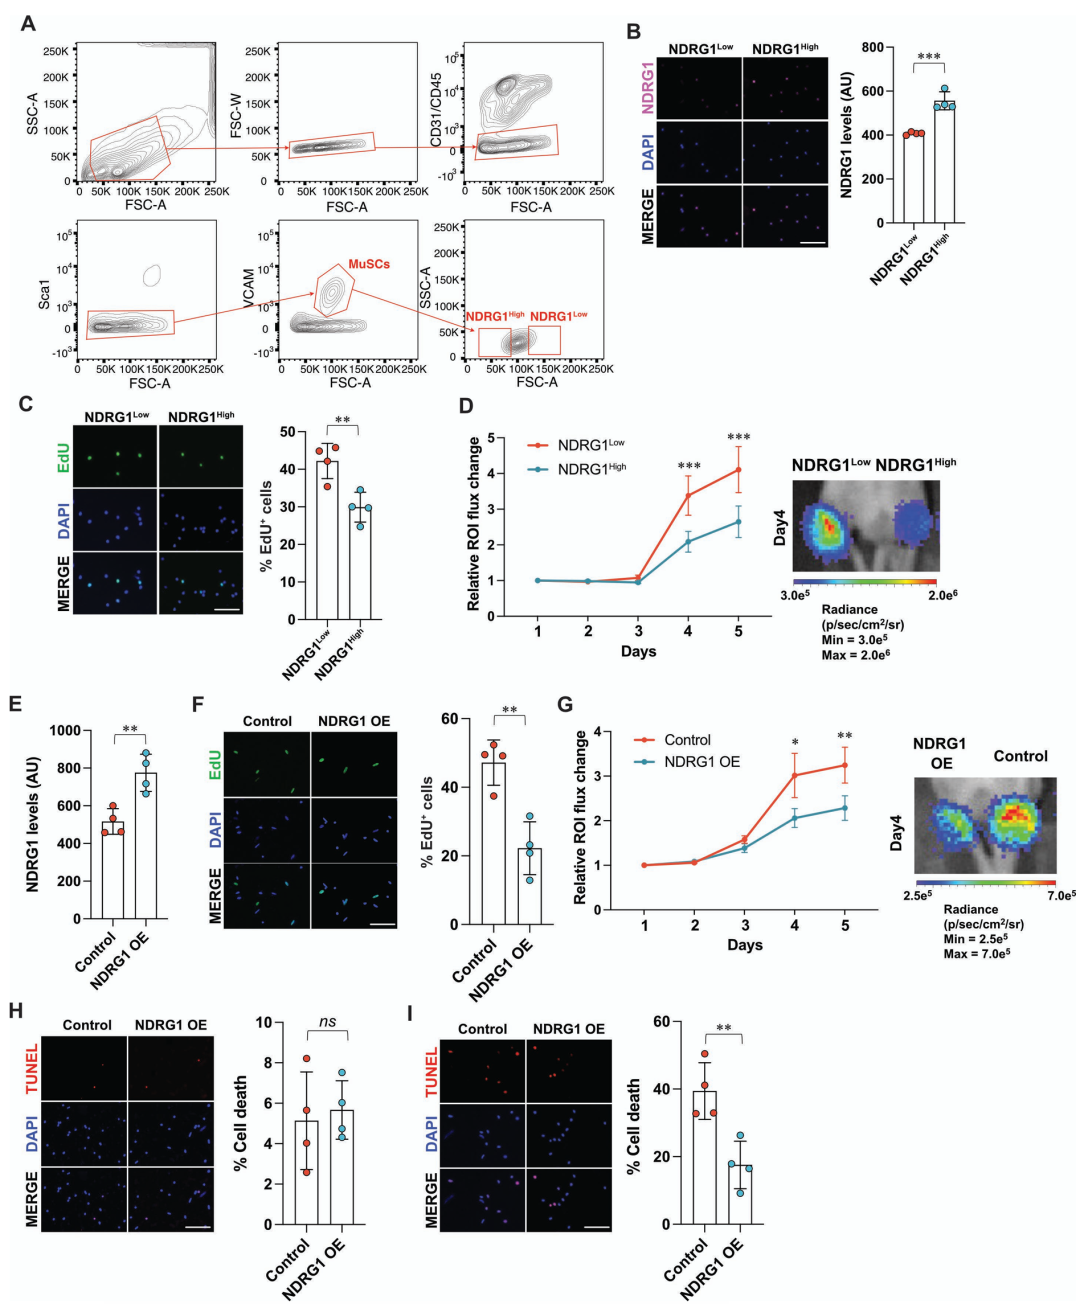
图S4 | NDRG1表达升高延迟了肌肉干细胞的激活
4、在衰老MuSCs中NDRG1积累所导致的表型变化是通过抑制PI3K-AKT-mTOR通路来介导的
研究者试图确定NDRG1在衰老MuSCs中发挥作用的分子机制。为此,他们对来自衰老的WT和NDRG1cKO小鼠的MuSCs进行了RNA-seq分析。PCA结果显示WT和NDRG1cKO小鼠的MuSCs呈现出明显不同的聚类模式;火山图分析进一步发现,两组之间存在大量差异表达基因(图S5A和S5B)。基因集富集分析(GSEA)显示,在NDRG1缺失后,PI3K-AKT-mTOR通路中编码蛋白质的mRNA丰度有所增加(图4A和4B)。研究人员通过蛋白质免疫印迹实验证实,在NDRG1缺失后,该通路的激活程度有所增强(图4C-4E)。研究人员对RNA-seq数据进行分析显示,NDRG1缺失的MuSCs中,PI3K-Akt-mTOR通路中的多个基因(PIK3CA、AKT1、PTEN和CXCR4)表达上调(图S5C)。同时,NDRG1cKO小鼠的MuSCs中,mTOR通路下游靶点S6的磷酸化水平升高,而在使用mTOR抑制剂雷帕霉素处理后该磷酸化水平则降低(图S5D)。鉴于mTOR通路在促进细胞周期进程中的作用,研究人员验证了衰老NDRG1cKO小鼠MuSCs中细胞周期进入S期的加速是否由mTOR通路介导。使用雷帕霉素抑制mTOR后,NDRG1cKO小鼠的MuSCs进入S期的加速现象被显著抑制(图4F)。
静息状态的MuSCs中mTOR的激活会诱导一种被称为GAlert的预激活状态,其特征为激活过程加速,并可促进肌肉再生。基于NDRG1cKO小鼠MuSCs中mTOR信号传导增强的现象,研究人员测试了这些细胞是否也处于这种预激活状态。在GAlert状态下,MuSCs具有两个显著特征:更容易自发地结束静止状态,以及细胞体积增大。事实上,衰老的NDRG1cKO小鼠的MuSCs表现出了这些表型,而年轻的NDRG1 cKO小鼠的MuSCs则没有表现出这些表型(图4G-4I;图S5E和S5F)。这两种GAlert表型均在雷帕霉素处理后消失,这进一步凸显了NDRG1cKO小鼠MuSCs与GAlert状态的MuSCs之间的相似性(图4J-L)。同样,MuSCs中NDRG1的缺失并未导致任何可能继发性引起MuSCs激活的肌肉损伤迹象(图S5G-5K)(小编注:S5G-I,在衰老基因型小鼠中检测。S5G通过Laminin+DAPI染色,定量centrally nucleated fibers,正常成熟肌纤维细胞核偏周边,而损伤后新生/再生肌纤维常出现中央核,如图中箭头所示,因此该指标用于判断是否存在明显的自发性肌肉损伤/再生。S5H、I,分别定量MYOD⁺/PAX7⁺、Ki67⁺/PAX7⁺,用于判断是否存在因潜在肌肉损伤而继发的MuSCs激活及进入活跃细胞周期。图S5J-K是在年轻的基因型小鼠中验证,从年轻小鼠中分离出的MuSCs分别检测MYOD和Ki67显示,年轻小鼠中NDRG1缺失之后并不会让MuSCs在基线状态下进入明显的激活和细胞周期活跃状态)。
处于GAlert状态的MuSCs表现出一种mTOR依赖性的存活能力和长期维持能力缺陷,这与NDRG1cKO小鼠的MuSCs的情况类似。用雷帕霉素处理衰老NDRG1cKO小鼠,可部分挽救因NDRG1缺失而导致的存活能力受损(图4M)。此外,雷帕霉素处理抑制了NDRG1缺失MuSCs所特有的S期进入速率增强和线粒体积累增加(图S6A和S6B)。雷帕霉素处理还挽救了NDRG1cKO小鼠在连续损伤后出现的再生功能障碍(图S6C和S6D)。因此,随着年龄的增长,NDRG1的积累会抑制MuSCs中的mTOR信号传导,使这些细胞不易被激活,但更具有韧性。这些状况与GAlert状态形成鲜明对比——在GAlert状态下,MuSCs的mTOR信号通路传导增强,因而更容易被激活,但其韧性却有所降低。
拓展阅读 MuSCs的GAlert状态 MuSCs的静息状态并不是单一的,存在G0和GAlert两个阶段,共同构成一个静息周期。GAlert MuSCs仍大多数不处于细胞周期,但相比普通G0 MuSCs,更容易进入细胞周期。GAlert是一种“预激活/战备”状态,相比G0,GAlert MuSCs具备细胞稍大、转录活性升高、线粒体活性高,对后续损伤反应更快等特点,使MuSCs在不真正进入增殖的情况下提前做好代谢和细胞周期准备。其中mTORC1是G0→GAlert转换的核心调节器,并且GAlert是可逆的。损伤信号消失以后,mTORC1下降,MuSCs可以重新回到类似G0的状态。
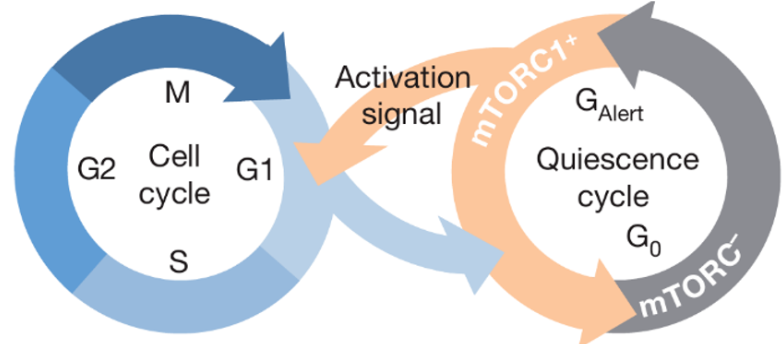
虽然GAlert/mTORC1让再生更快,但不能长期维持,短暂激活mTORC1对组织再生是有益的。损伤以后需要mTORC1快速升高,才能让干细胞快速退出静息、启动增殖。但是持续或者反复激活mTORC1会导致干细胞损失。因为有研究发现mTORC1不只是促进干细胞激活,它还会推动MuSCs往肌源性方向分化,从而导致干细胞流失。
参考文献: [1]Haller, Samantha, et al. Cell stem cell. 2017. [2] Rodgers, Joseph T., et al. Nature. 2014.
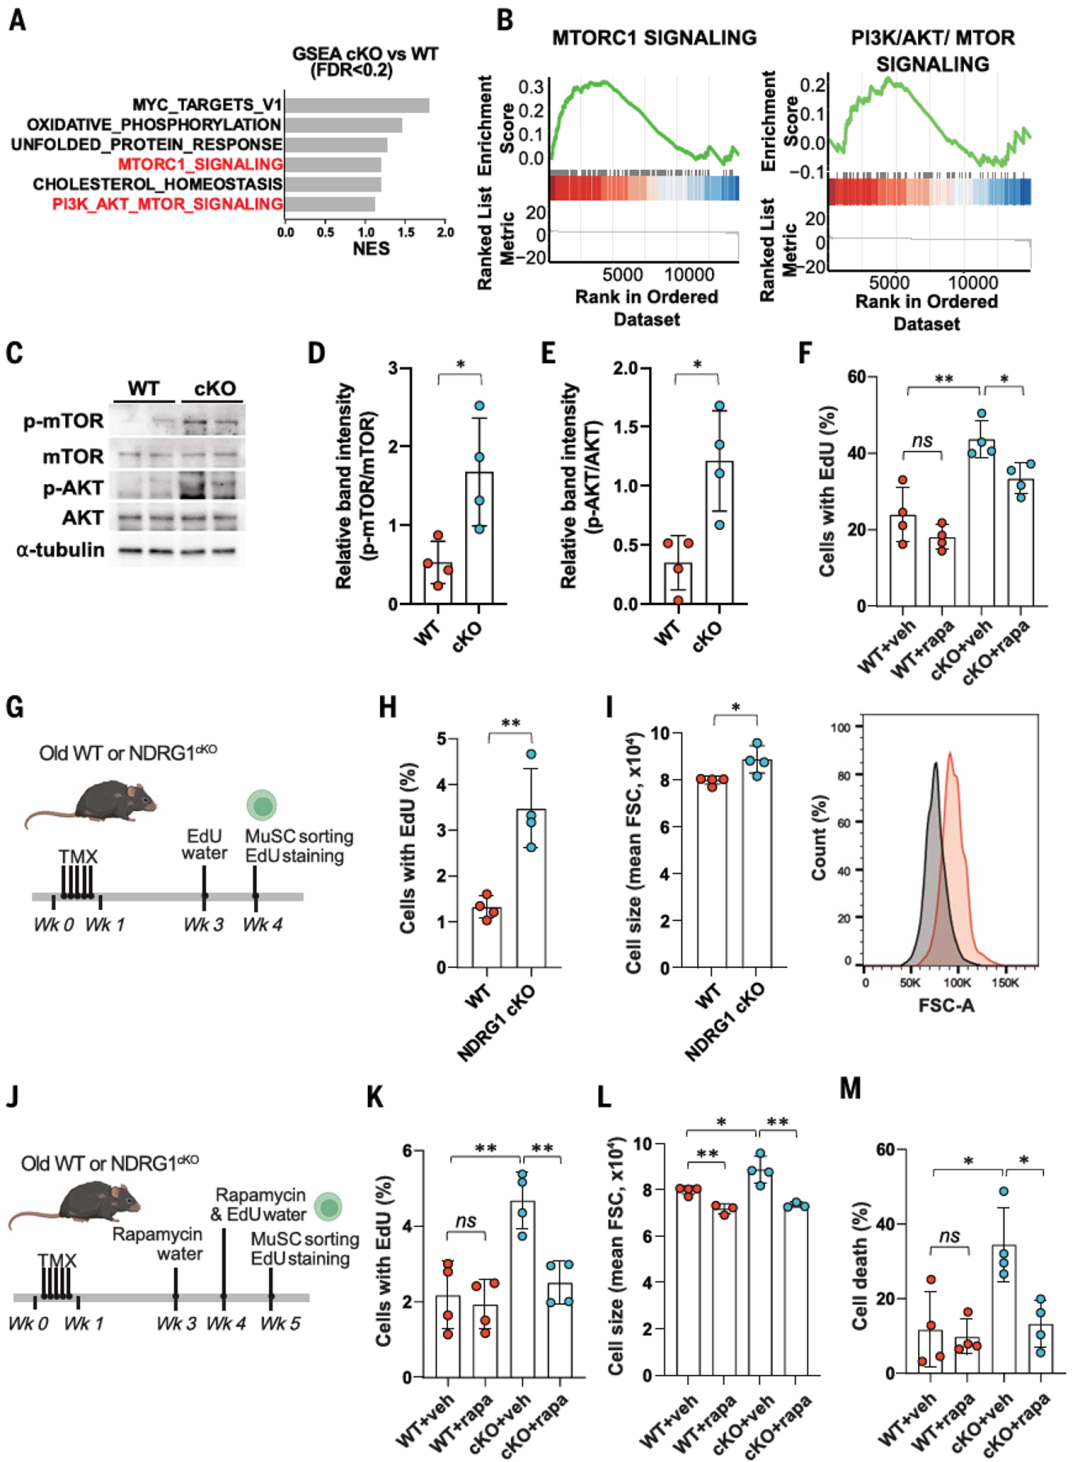
图4 | MuSCs中NDRG1表达升高通过抑制PI3K‑AKT‑mTOR通路所产生的表型后果评估
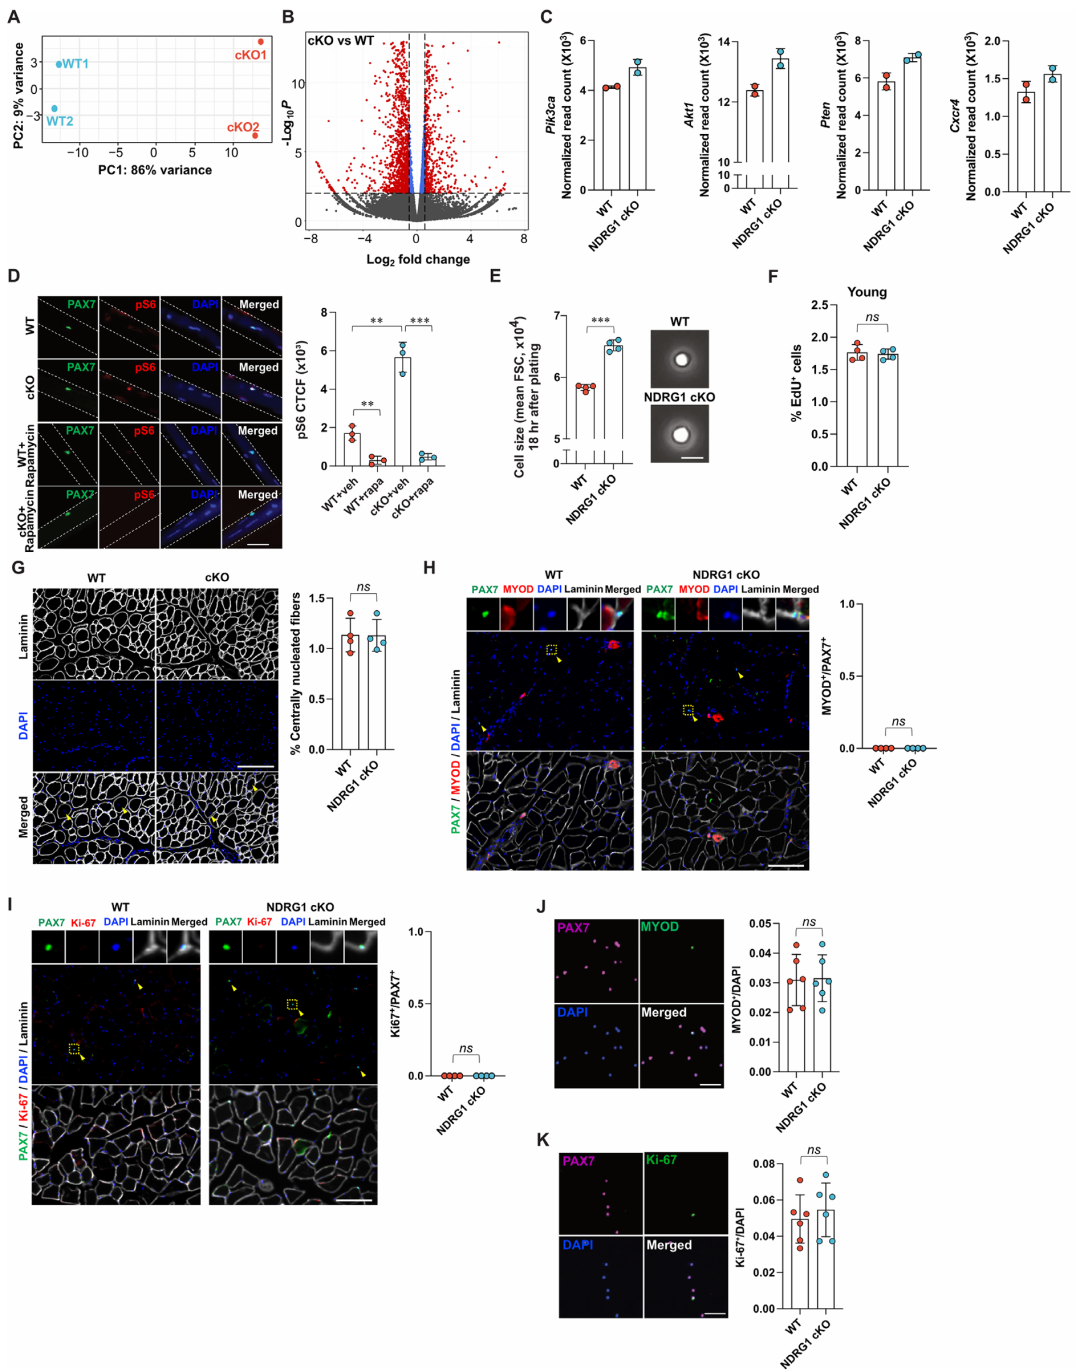
图S5 | 老年NDRG1cKO小鼠MuSCs的类早衰样表型与PI3K-Akt-mTOR通路激活相关,且非损伤应答所致
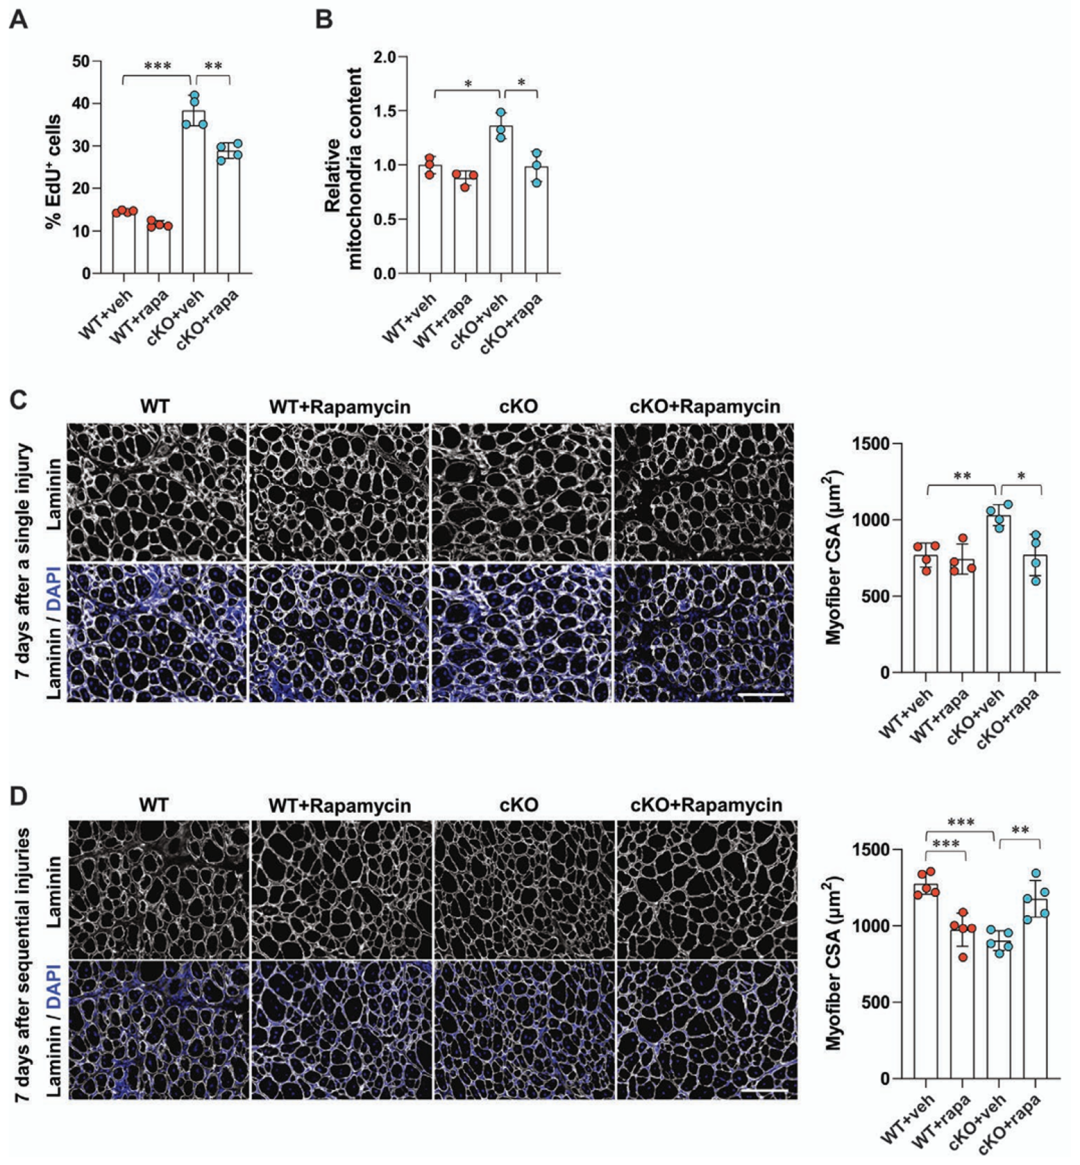
图S6 | NDRG1在衰老MuSCs中表达升高所导致的表型后果可被mTOR抑制所减弱
总结
衰老的特征在于组织损伤后的修复能力和再生能力的下降。在骨骼肌中,这种能力的下降主要源于MuSCs功能受损,导致其无法有效促进肌肉再生。研究人员揭示了这种与衰老相关的功能障碍的一个原因——细胞幸存者偏差,它优先保证了干细胞的存续,却以牺牲其功能为代价。随着年龄增长,MuSCs上调了一种肿瘤抑制基因的表达水平——N-myc下调基因1(NDRG1)。该基因通过抑制哺乳动物的雷帕霉素靶蛋白(mTOR)通路,提高了这些细胞的长期存活能力,但代价是削弱了它们迅速激活并参与肌肉再生的能力。这种随年龄增长而出现的肌肉再生延迟,可能源于一种权衡,即倾向于优先保障干细胞的长期存活能力,而非即时的再生能力。
https://blog.sciencenet.cn/blog-3483272-1552226.html
上一篇:Cell Metabolism:扛住年迈 肌不可失(下)
下一篇:Cell Metabolism:不饿不吐不反弹,PrRP甩掉一身肥肉(上)

